Vymyslel jsem vlastní typologii osobnosti založenou na DNA a otestoval ji na slavných
Začalo to pár markery z běžného DNA testu a zvědavostí, co dalšího vyčtu z téměř dvou milionů záznamů své DNA pomocí předních AI modelů a moderních genomických databází. Výsledkem je, že jsem se o sobě dozvěděl stovky zajímavých informací. Nakonec jsem vytvořil 10osý neurobiologický model DNA-10 s 59 049 kombinacemi, ukázal ho otevřeně na svém vlastním genomu a poslal do neúprosného zátěžového testu na několika slavných osobnostech.
Začalo to docela nevinně. Z běžného komerčního DNA testu jsem měl v ruce pár hezkých kartiček a k tomu textový soubor se surovými daty (VCF), ve kterém leží téměř dva miliony genetických záznamů (přesně 1 744 352 pozic). Zajímalo mě, co dalšího z toho dokážu vyčíst pomocí předních AI modelů napříč hlavními laboratořemi, veřejných vědeckých databází a nových neuronových modelů pro interpretaci genomu.
Brzy jsem se o sobě dozvěděl stovky ověřitelných detailů z biologie mozku i těla. A tehdy mě napadla ještě drzejší otázka: dá se z biologie mozku postavit smysluplná „typologie osobnosti“, která není ani genetický horoskop, ani další MBTI, a jak obstojí v tvrdém slepém testu na mně i na několika slavných osobnostech světa?
Experiment v kostce
genetických pozic v mém lokálním souboru VCF (Illumina GRCh38)
plně ověřených markerů z 301 prověřených rsID napříč 5 databázemi
unikátních kombinací (3¹⁰) místo zjednodušených škatulek typu MBTI
1. Jak se z pár markerů stalo 256 ověřených variant a multi-omická mapa
Komerční DNA reporty vám typicky ukážou několik desítek vlastností, často zabalených do zjednodušených škatulek bez vysvětlení, na jakých konkrétních pozicích v genomu stojí. V mém surovém exportu z čipu Illumina (GRCh38) leželo 1 744 352 záznamů. Pustil jsem se proto do systematického experimentu, ve kterém jsem vedle sebe a proti sobě zapojil přední frontier jazykové modely napříč hlavními AI laboratořemi. Sloužily mi v roli výzkumných asistentů, křížových oponentů i programátorů lokálních ověřovacích skriptů.
Hned od začátku jsem si nastavil dvě tvrdá pravidla, která považuji při práci s AI i citlivými daty za zásadní:
- Přísné soukromí dat: Můj osobní soubor VCF nikdy neopustil lokální počítač. Do veřejných vědeckých API šly výhradně veřejné identifikátory variant (
rsID) nebo názvy genů; samotné porovnání s mými genotypy probíhalo čistě lokálně. - Nulová důvěra v paměť LLM: Jazykové modely mají při práci s genetikou nebezpečný sklon zaměňovat orientaci řetězců DNA (
+vs.-vlákno) nebo si domýšlet populační četnosti. Každý jednotlivý marker proto prošel tvrdou skriptovou kontrolou: ověřením pozice na referenčním genomuGRCh38, kvality sondy (GenCall), orientace vlákna a u variant chybějících na čipu také hledáním přímých evropských vazebných zástupců (linkage disequilibrium,r² ≥ 0,91v projektu 1000 Genomes EUR).
Postupně jsem se z několika úvodních položek propracoval přes první cílenou sadu 106 markerů a kognitivně-behaviorální rozšíření (224) až na 256 plně ověřených variant (z celkem 301 cíleně prověřených rsID). Aby nezůstalo u pouhého párování tabulek, propojil jsem tato veřejná rsID přes specializované výzkumné nástroje a API rovnou s pěti pilíři moderní genomiky:
- gnomAD v4: přesné populační četnosti v evropské populaci (Non-Finnish European, NFE) a míra evolučního tlaku na gen (
pLI,LOEUF). - GTEx Portal v10: přímá měření z reálných lidských tkání (včetně konkrétních mozkových center), která ukazují, zda daná varianta skutečně mění množství přepisovaného genu (cis-eQTL).
- Open Targets Platform & NHGRI–EBI GWAS Catalog: celogenomové asociační studie na stovkách tisíc lidí a statistický fine-mapping (
L2Gskóre). - UCSC Genome Browser / ENCODE: mapování regulačních prvků (enhancerů, promotorů) a vazebných míst transkripčních faktorů.
- Google DeepMind AlphaGenome API: živé neuronové předpovědi funkčního a regulačního dopadu variant (kalibrované skóre AlphaGenome Variant Impact pro 248 ověřených variant z mého seznamu, plus detailní 1-megabázové modely pro vybrané regulační lokusy).
Když se přede mnou začala rýsovat tahle molekulární mapa mozku, od rychlosti odbourávání dopaminu přes oxytocinové receptory až po citlivost na kofein a vyhasínání strachu, napadla mě provokativní otázka: šlo by z těch nejlépe biologicky ukotvených mozkových systémů poskládat novou teorii temperamentu do 10 faktorů?
2. Kde končí věda a začíná „genetický horoskop“
Než člověk začne mluvit o „genetické typologii osobnosti“, musí si nalít čistého vína. Behaviorální genetika za posledních dvacet let jasně ukázala tři tvrdá fakta:
- Geny dělají u osobnosti zhruba 40–50 %. Zbývající polovinu tvoří výchova, profese, ambice, životní náhody, traumata a návyky.
- Neexistuje „jeden gen pro empatii“ ani „gen pro introverzi“. Jednotlivé varianty (SNP) v celopopulačních studiích osobnosti vysvětlují typicky jen 0,1–1 % rozptylu samotného chování. Zbytek je rozprostřen do tisíců drobných variant. Ostatně velká revizní studie Bordera a kolegů (American Journal of Psychiatry, 2019) ukázala, že celá řada slavných starých „kandidátních genů“ (např. serotoninový transportér 5-HTTLPR u deprese) ve statisícových vzorcích neobstála.
- Co ale v mozku biologicky reálně funguje: konkrétní biochemické a neurofyziologické „ventily“. Patří mezi ně rychlost odbourávání dopaminu v prefrontální kůře, rozklad vlastního endokanabinoidu anandamidu, hladina exprese oxytocinového receptoru v sociálních centrech mozku (v GTEx s pravděpodobností náhody
P = 4,5 × 10⁻²⁰), dráždivost neuronálních vápníkových kanálů nebo citlivost adenosinového receptoru na kofein.
Moderní psychologie se přitom biologii snaží do osobnosti promítnout už desítky let, od Cloningerova modelu temperamentu a charakteru (TCI) až po DeYoungovu kybernetickou teorii Big Five. Rozhodl jsem se proto nepostavit žádnou osudovou věštírnu, ale 10 nezávislých biologických os („táhel“), které popisují spíš tovární nastavení a regulační páky mozku.
3. Deset biologických os osobnosti a proč jsem zrušil „krabice“
Vybral jsem 10 co nejnezávislejších mozkových systémů, z nichž každý leží na odlišném chromozomu nebo v geneticky nezávislé oblasti, má jasný biologický korelát a v evropské populaci se běžně vyskytuje ve třech stavech (levý pól, střed a pravý pól). U každé osy jsem si poctivě označil sílu důkazů (★★★ replikovaný GWAS nebo silný molekulární eQTL, ★★☆ jasný efekt v mozku závislý na kontextu, ★☆☆ zajímavý kandidátní marker s menším efektem).
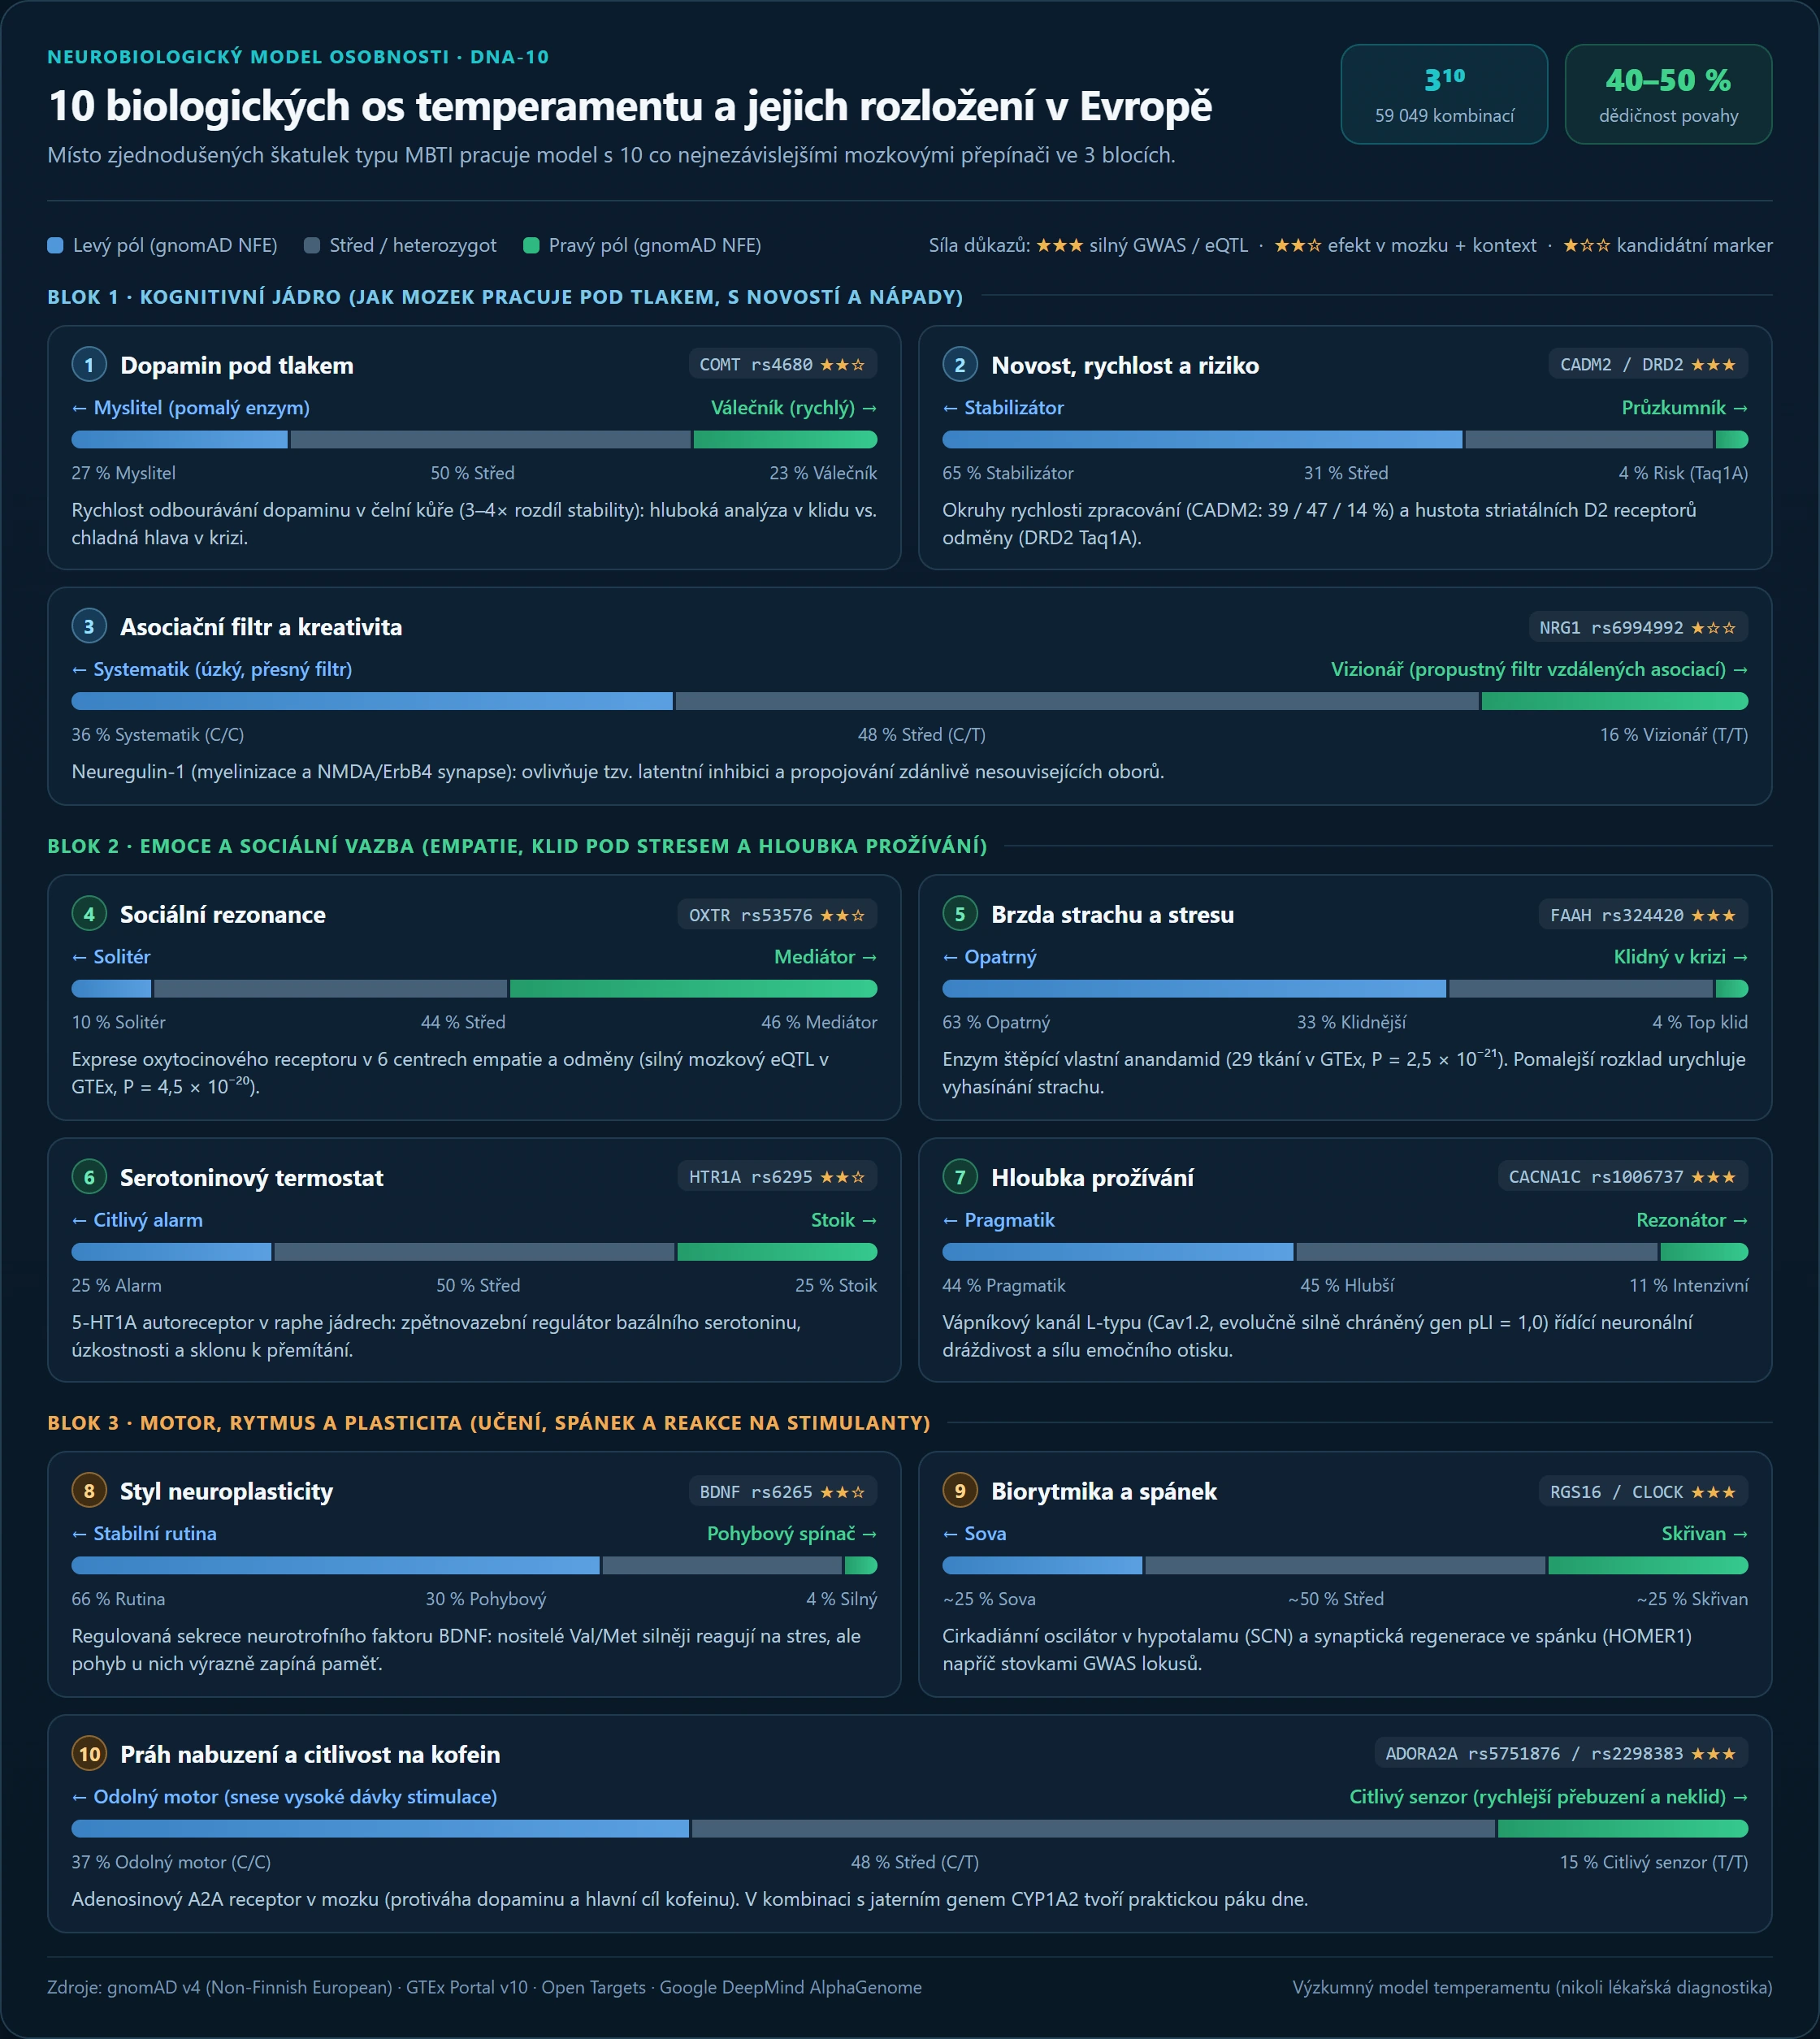
Vizuální mapa celého 10osého modelu DNA-10: tři hlavní funkční bloky mozku a skutečné evropské zastoupení obou pólů podle databáze gnomAD v4.
Pro rychlé ověření konkrétních variant a přesných čísel přikládám i kompletní technický přehled všech deseti os:
| # | Biologická osa (dva póly) | Hlavní gen & důkaz | Biologický korelát v mozku | Rozložení v Evropě (gnomAD v4 NFE) |
|---|---|---|---|---|
| 1 | Dopamin pod tlakem Myslitel ↔ Válečník | COMT (rs4680) · ★★☆ | Enzym odbourávající dopamin v čelní kůře (3–4× rozdíl stability enzymu). Pomalý = hluboká analýza v klidu; rychlý = chladná hlava v krizi. | 27 % Myslitel (A/A) · 50 % Střed (G/A) · 23 % Válečník (G/G) |
| 2 | Novost, rychlost & riziko Stabilizátor ↔ Průzkumník | CADM2 (rs17518584) ★★★DRD2/ANKK1 Taq1A ★★☆ | Synaptická adheze okruhů rychlosti zpracování a otevřenosti + hustota striatálních D2 receptorů odměny. | Taq1A: 65 % stabilní · 31 % střed · 4 % silný tah na novost (CADM2: 39 / 47 / 14 %) |
| 3 | Asociační filtr & kreativita Systematik ↔ Vizionář | NRG1 (rs6994992) · ★☆☆ | Neuregulin-1 (myelinizace, NMDA/ErbB4 synapse, tzv. latentní inhibice, tedy propustnost filtru pro vzdálené asociace). | 36 % Systematik (C/C) · 48 % Střed (C/T) · 16 % Vizionář (T/T) |
| 4 | Sociální rezonance & empatie Solitér ↔ Mediátor | OXTR (rs53576) · ★★☆ | Exprese oxytocinového receptoru v 6 centrech empatie a odměny (silný mozkový eQTL v GTEx, P = 4,5 × 10⁻²⁰). | 10 % Solitér (A/A) · 44 % Střed (A/G) · 46 % Mediátor (G/G) |
| 5 | Endokanabinoidní brzda strachu Opatrný ↔ Klidný v krizi | FAAH (rs324420) · ★★★ | Enzym štěpící vlastní anandamid. Nižší aktivita (29 tkání v GTEx, P = 2,5 × 10⁻²¹) urychluje vyhasínání strachu v amygdale. | 63 % Opatrný (C/C) · 33 % Klidnější (C/A) · 4 % Top klid (A/A) |
| 6 | Serotoninový termostat Citlivý alarm ↔ Stoik | HTR1A (rs6295) · ★★☆ | 5-HT1A autoreceptor v raphe jádrech: hlavní zpětnovazební regulátor bazálního serotoninu a sklonu k přemítání. | 25 % Alarm (-1019G/G) · 50 % Střed · 25 % Stoik (-1019C/C) |
| 7 | Hloubka emočního prožívání Pragmatik ↔ Rezonátor | CACNA1C (rs1006737) · ★★★ | Vápníkový kanál L-typu (Cav1.2, extrémně evolučně chráněný gen pLI = 1,0) řídící dráždivost neuronů a intenzitu emočního otisku. | 44 % Pragmatik (G/G) · 45 % Hlubší (G/A) · 11 % Intenzivní (A/A) |
| 8 | Styl neuroplasticity & učení Stabilní rutina ↔ Pohybový spínač | BDNF (rs6265) · ★★☆ | Regulovaná sekrece růstového faktoru BDNF. Nositelé Val/Met jsou citlivější na stres, ale fyzický pohyb u nich výrazně „zapíná“ paměť a učení. | 66 % Rutina (Val/Val) · 30 % Pohybový (Val/Met) · 4 % Silný (Met/Met) |
| 9 | Biorytmika & spánek Sova ↔ Skřivan | Polygenní (RGS16, CLOCK, HOMER1) · ★★★ | Cirkadiánní oscilátor v hypotalamu (SCN) a synaptická regenerace ve spánku napříč stovkami replikovaných GWAS lokusů. | V Evropě zhruba 25 % Sova · 50 % Střed · 25 % Skřivan |
| 10 | Práh nabuzení & kofein Odolný motor ↔ Citlivý senzor | ADORA2A (rs5751876 / rs2298383) · ★★★ | Adenosinový A2A receptor v mozku (protiváha dopaminu a hlavní cíl kofeinu) určující práh nervového přebuzení a neklidu. | 37 % Motor (C/C) · 48 % Střed (C/T) · 15 % Senzor (T/T) |
Proč 59 049 kombinací místo 5 nebo 16 krabic?
Nejdřív jsem zkoušel tuhle desítku zjednodušit po vzoru klasických typologií do 5 hlavních archetypů (Krizový stratég, Hluboký architekt, Vizionář-mediátor, Průzkumník hranic a Citlivý rezonátor). Brzy se ale ukázal zásadní problém, který trápí i slavné MBTI: redukce do pár škatulek ničí informace. Jakmile má člověk v sobě dvě zdánlivě protichůdné kvality (třeba železný klid pod tlakem a zároveň extrémní emoční hloubku), krabice jednu z nich zahodí.
Jenže dnes nežijeme v době papírových dotazníků z 50. let. Počítači je úplně jedno, jestli pracuje s 5 archetypy nebo se všemi 3¹⁰ = 59 049 kombinacemi. Napsal jsem proto jednoduchý deterministický generátor, který místo jedné hrubé nálepky přiřadí každému člověku 9písmenný kód ze tří bloků (XXX-XXXX-XX, tj. 3⁹ = 19 683 profilů, s 10. osou biorytmiky 59 049): zvlášť pro Kognitivní jádro, zvlášť pro Emoce a sociální vazbu a zvlášť pro Energetický motor a plasticitu.
A jak tenhle model pojmenovat? Celým, lehce hravým názvem jsem ho pokřtil jako JEDNA test (Janův Endofenotypový DNA test, přičemž endofenotyp je v neurogenetice přesný odborný termín pro měřitelný biologický mezičlánek mezi genem a chováním, a zároveň hezky hraje na heslo „JeDNA z 59 049“). V grafech, tabulkách i dalším textu ho ale pro přehlednost zkráceně nazývám DNA-10.
4. Pod kapotou jednoho genu: jak se jediné písmeno v DNA promítne do mozku a chování
Než se podíváme na můj vlastní profil, zastavme se na chvíli u jedné naprosto oprávněné skeptické otázky: jak přesně může jediné vyměněné písmeno v DNA ovlivnit fungování lidského těla, neurochemii a nakonec i reakci na stres?
Nejlépe je to vidět na ose #1 (COMT rs4680, tedy Myslitel vs. Válečník), kde máme celý kauzální řetězec od genetického kódu až po chování pod tlakem zmapovaný krok za krokem v reálné lidské tkáni. Takhle vypadá celých pět pater na jednom obraze:
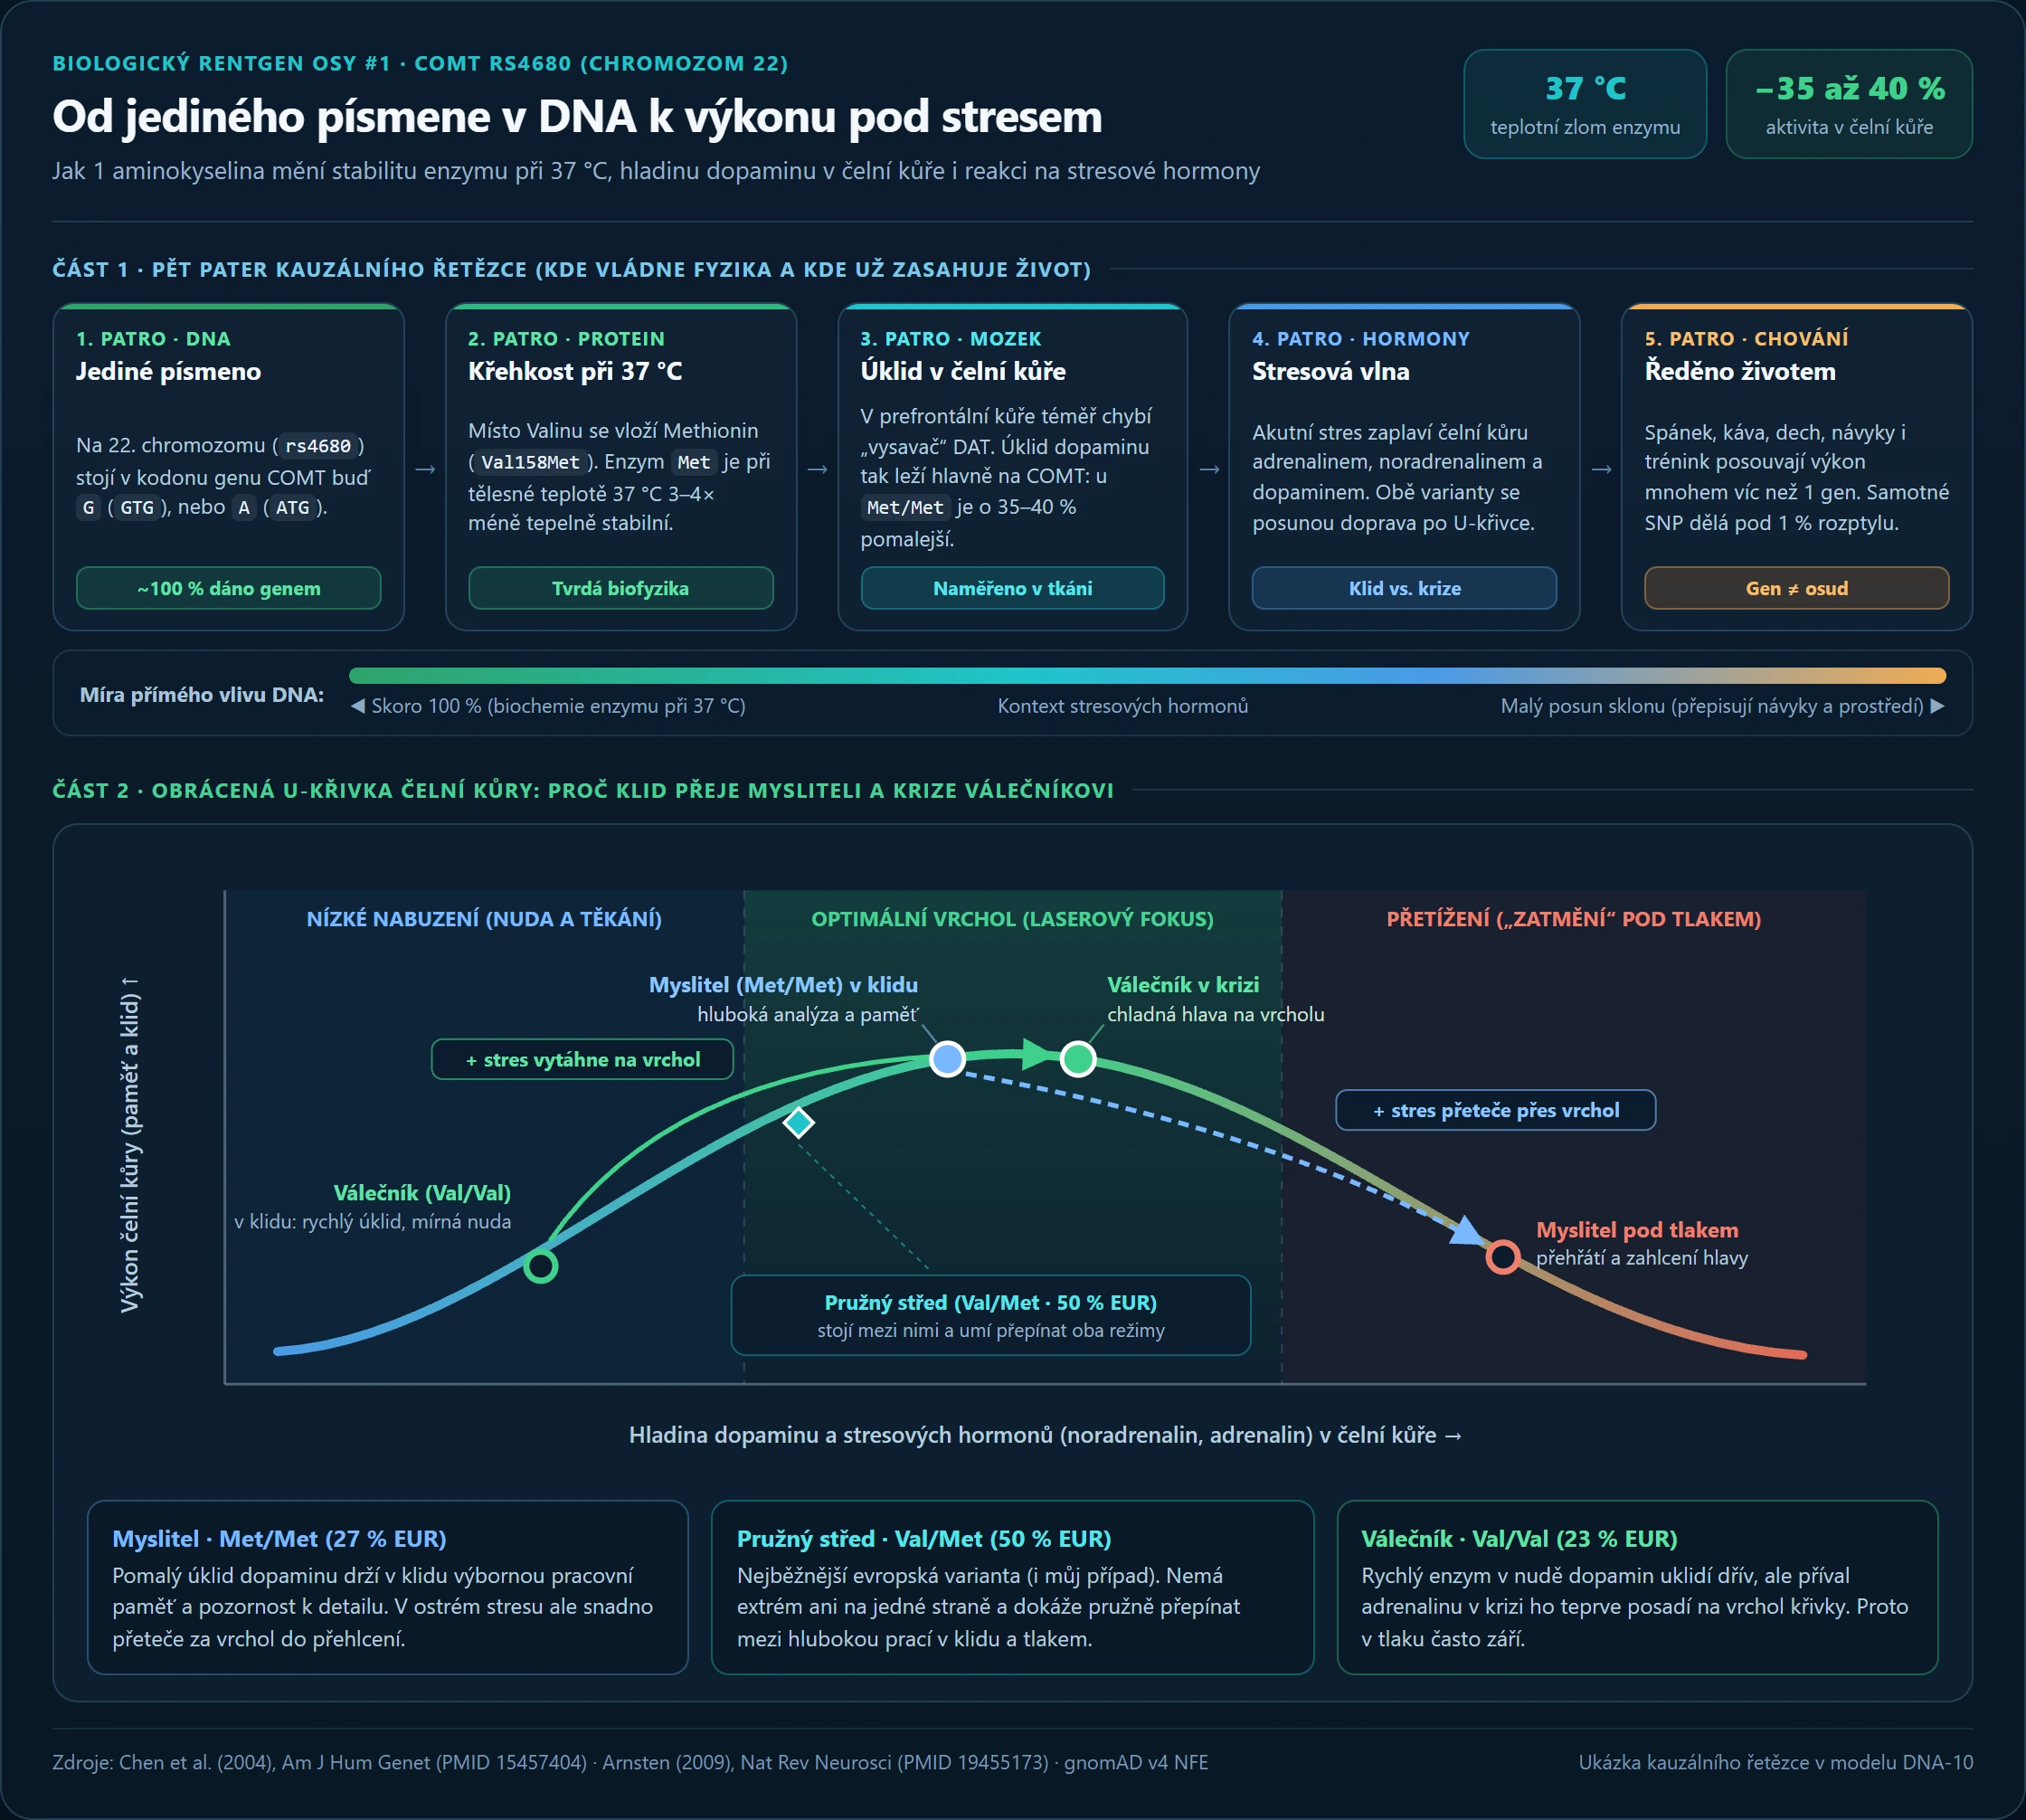
Od fyziky jediné aminokyseliny až po stresové hormony a obrácenou U-křivku: přesná hranice mezi tím, co určuje biochemie, a tím, kde už rozhodují návyky a prostředí.
Když si těch pět pater rozebereme bez odborného žargonu, skládají překvapivě srozumitelný příběh:
- 1. patro, DNA (jediné písmeno na 22. chromozomu): V genu
COMT(pozicers4680) se mezi lidmi liší jediný znak ze tří miliard písmen lidského genomu. Buď tam stojíG(kodonGTG), neboA(kodonATG). - 2. patro, bílkovina a fyzika při 37 °C: To jediné písmeno vymění jedinou aminokyselinu (na 158. pozici z 271 v mozkové formě enzymu): Valin (
Val) za Methionin (Met). Nejde o žádný „rozbitý gen“, ale o obyčejnou tepelnou stabilitu. VariantaMetje při běžné teplotě lidského těla 37 °C konstrukčně křehčí. V laboratorních testech při 37 °C je izolovaný enzym 3–4× méně stabilní a v reálné lidské mozkové tkáni (Chen et al., 2004) to znamená zhruba o 35–40 % pomalejší odbourávání dopaminu u nositelůMet/MetoprotiVal/Val. - 3. patro, anatomie mozku (proč zrovna čelní kůra): Většina mozku uklízí dopamin ze synapsí pomocí rychlého buněčného „vysavače“ (dopaminového transportéru DAT). V prefrontální kůře (řídicím centru pro logiku, plánování a pracovní paměť) ale tenhle vysavač téměř chybí. Úklid dopaminu tam proto z více než poloviny leží právě na enzymu COMT. Jediné písmeno v DNA tedy neovlivňuje celý mozek stejně, ale cílí přímo na „řídicí věž“ za čelem.
- 4. patro, hormony stresu a obrácená U-křivka: Čelní kůra nefunguje podle pravidla „čím víc dopaminu, tím líp“, ale podle obráceného písmene U (Arnsten, 2009). Při nízké hladině mozek těká a nudí se, na vrcholu křivky drží laserové soustředění, a když chemie přeteče přes vrchol, receptory se zahltí a racionální řízení se přehřeje (známé „zatmění“ pod tlakem). A přesně do toho vstupuje akutní stres, kdy tělo zaplaví mozek přívalem noradrenalinu, adrenalinu a dopaminu:
- Myslitel (
Met/Met, 27 % Evropanů): v klidu uklízí dopamin pomalu, takže jeho čelní kůra sedí přirozeně blízko vrcholu U-křivky (silná pracovní paměť a hluboká analýza). V ostrém stresu ale hormonální vlna snadno přeteče doprava za vrchol do přehlcení. - Válečník (
Val/Val, 23 % Evropanů): rychlý enzym v klidu a nudě uklidí dopamin dřív, takže mozek sedí na levém svahu pod vrcholem. Jakmile ale přijde krize a adrenalin, stresová vlna ho teprve vytáhne na samotný vrchol U-křivky, a proto v chaosu často podává nejlepší výkon. - Pružný střed (
Val/Met, 50 % Evropanů, tedy i můj případ): stojí mezi oběma póly a dokáže přepínat mezi hlubokou prací v klidu a tlakem. - Mimochodem to nádherně vysvětluje i evoluci: v lidské skupině jste vždy potřebovali jak stratégy do klidu, tak chladnokrevné řešitele do krize. Proto příroda nevymazala ani jednu variantu a obě v Evropě dodnes žijí v rovnováze.
- Myslitel (
- 5. patro, kde končí biologie a začíná reálné chování: Tohle je nejdůležitější korekce celého rozboru. Patra 1 až 3 jsou skoro ze 100 % daná fyzikou: enzym při 37 °C prostě pracuje rychleji nebo pomaleji a vůlí ho nepřeprogramujete. V patrech 4 a 5 se ale genetický signál silně ředí životem. Kvalita spánku, ranní káva, chronický stres, dechová cvičení, trénink i profese posouvají člověka po té U-křivce doleva a doprava mnohem víc než jeden gen. Proto v plošných studiích (kde se navíc klid i stres zprůměrují dohromady) vysvětlí samotný
COMTpod 1 % rozptylu chování. Neurčuje váš osud, ale ukazuje, jaký „odpor terénu“ cítí váš mozek v klidu oproti krizi.
5. Ukázka #1 naostro: Můj vlastní profil (PSV-EKSH-PS) vs. realita
Aby experiment nestál jen na teorii, pustil jsem ho naplno na sobě. Nemám problém svoje osobní neurogenetické markery otevřeně zveřejnit jako první kompletní případovou studii. Takhle vypadá můj celý 10osý profil DNA-10 na jedné kartě:
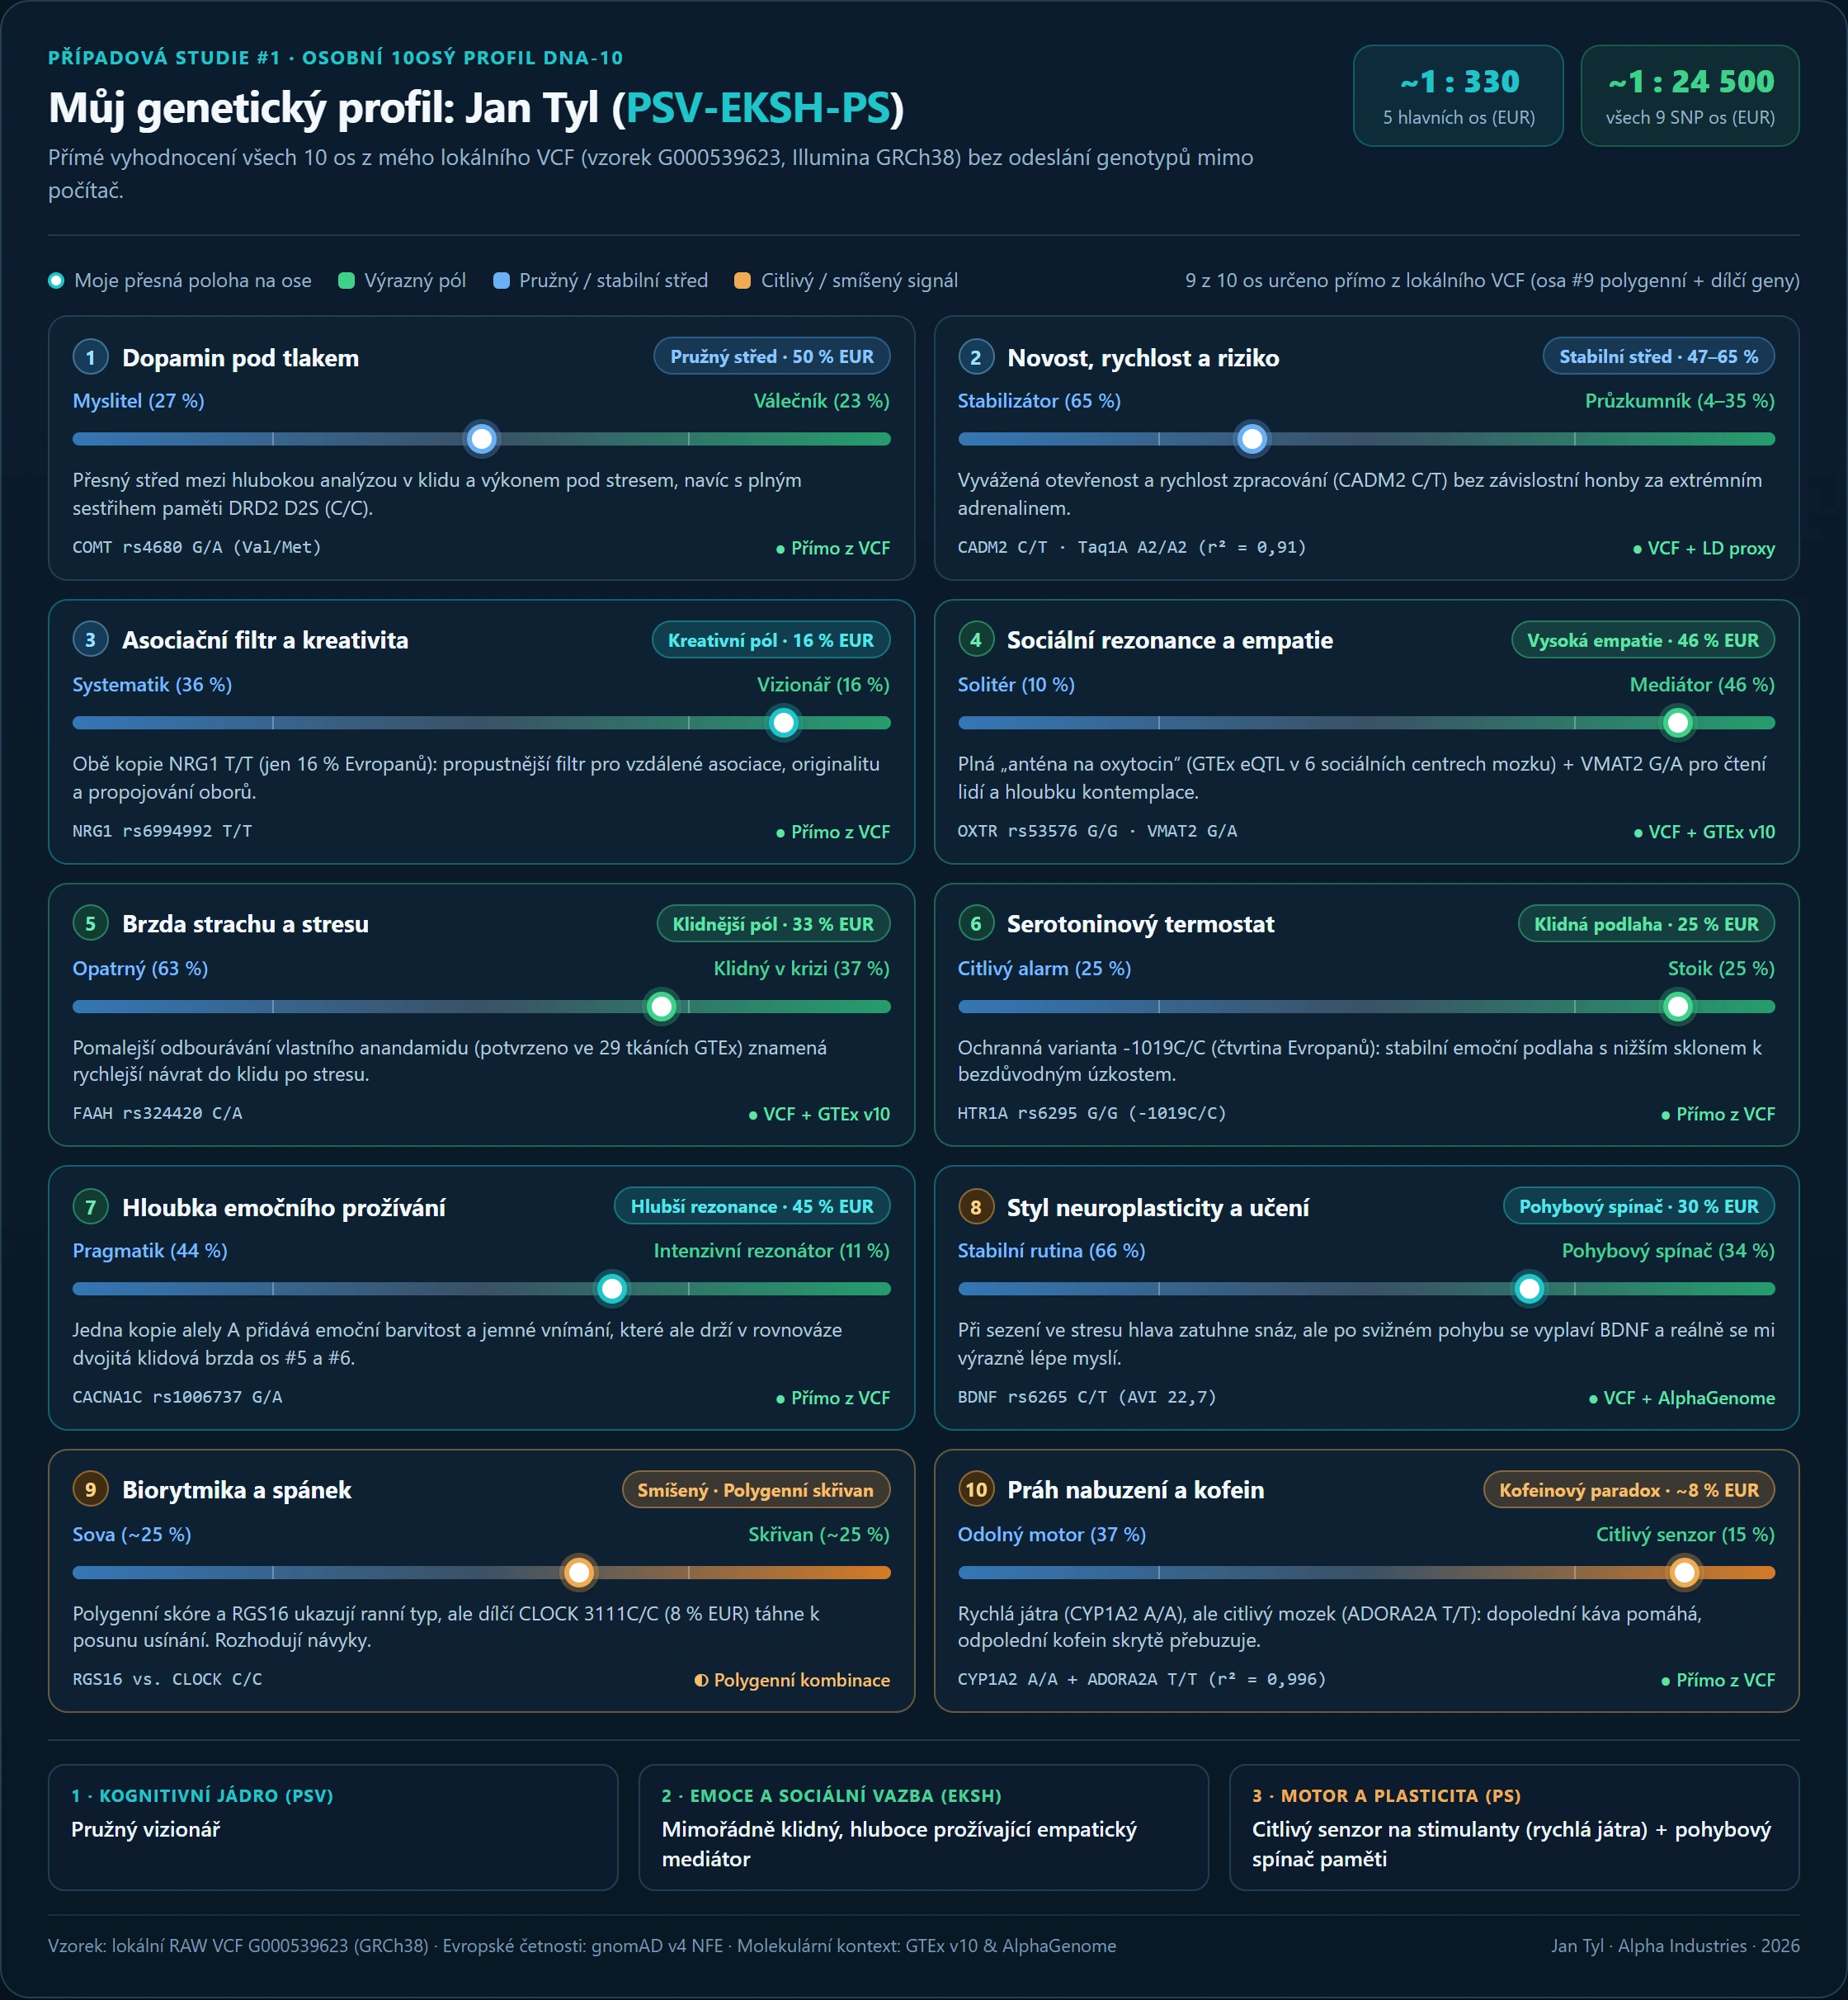
Kompletní výstup mého vzorku G000539623 ze všech 10 os (evropská vzácnost kombinace ~1 : 24 500; už samotných 5 hlavních os sdílí zhruba 1 ze 330 Evropanů).
Nejpraktičtější na celém profilu nebyly abstraktní nálepky, ale tři konkrétní biologické páky, které přesně vysvětlují moje každodenní zkušenosti:
- Vzácná „klidná tvořivost“: Zatímco mnoho kreativních a hluboce prožívajících lidí mívá úzkostnější podlahu, u mě se k otevřenému asociačnímu filtru (
NRG1 T/T, 16 % Evropanů, ve studii S. Kériho z roku 2009 spojenému s nejvyšší tvůrčí originalitou) a citlivému prožívání (CACNA1C G/A) přidává dvojitá klidová brzda (FAAH C/A+ ochrannýHTR1A -1019C/C). Spolu se silným oxytocinovým receptorem (OXTR G/G) a pružným středemCOMT(Val/Met) to tvoří přirozený most mezi strategickou kreativitou a klidným čtením lidí. - Kofeinový paradox (
CYP1A2 A/A+ADORA2A T/T, jen ~8 % Evropanů): Játra mi kofein odbourávají rychle, jenže mozkový receptorADORA2Aje citlivý. Dopolední káva mi dává čistý tah, ale odpolední kofein (včetně pravého zeleného či černého čaje) mi skrytě přebuzuje mozek a zhoršuje spánek. - Pohybový spínač paměti (
BDNF Val/Met, AlphaGenome AVI22,7): Při dlouhém sezení pod stresem hlava zatuhne snáz, ale po svižném pohybu tělo vyplaví vlnu neurotrofního faktoru BDNF a reálně se mi výrazně lépe myslí.
Slepý test proti mému skutečnému Big Five (2025–2026)
Nejdřív jsme čistě z těchto 10 genů spočítali slepý odhad mého Big Five. Teprve potom jsem ho porovnal s celou řadou svých nezávislých měření z let 2025 až 2026. Nešlo o jeden náhodný dotazník, ale o průměr z pěti samostatných experimentů: standardizovaného dotazníku BFI-10 z února 2025 a čtyř dlouhodobých psychologických rozborů mých rozhovorů a deníků z našeho projektu Hyperprostor (postavy Bernard a Tazatel).
Svoje přesné osobní skóre Big Five tu publikovat nepotřebuji, podstatná je velikost chyby, tedy o kolik se čistě genetický odhad spletl proti průměru pěti reálných měření na 10bodové škále:
| Dimenze Big Five | Shoda směru (DNA vs. 5 měření 2025–2026) | Odchylka na 10bodové škále |
|---|---|---|
| O (Otevřenost) | Stejný směr | 1,1 bodu |
| C (Svědomitost) | Stejný směr | 0,8 bodu |
| E (Extraverze) | Stejný směr | 0,9 bodu |
| A (Přívětivost) | Stejný směr | 0,1 bodu |
| N (Neuroticismus) | Stejný směr | 0,4 bodu |
| Celkový průměr (MAE) | Všech 5 z 5 dimenzí stejným směrem | 0,66 bodu z 10 |
Výsledek na mně byl až zarážející: průměrná chyba jen MAE = 0,66 z 10 bodů napříč pěti nezávislými měřeními z různých let a všech 5 z 5 dimenzí stejným směrem. Navíc do sebe krásně zapadly i dva jemné kontrasty z dlouhodobých rozborů:
- Rozdíl mezi debatou a soukromým deníkem: v diskusích působím výrazně společenštěji než v soukromých zápiscích, což přesně odpovídá „hlubokému ambivertovi“ (
OXTR G/Gmě baví ladit se na lidi, ale citlivýADORA2Aa stabilníTaq1Apotřebují po akci ticho na dobití). - Krátkodobý výkyv stresu v květnovém deníku: v jednom z rozborů mi jednorázově vyskočil Neuroticismus přesně v období, kdy jsem psal o pracovním přetížení ze „zastávání všech rolí ve firmě“, zatímco ve všech ostatních obdobích zůstal nízko. Je to učebnicová ukázka rozdílu mezi pevnou základní povahou (trait) a dočasným přetížením (state).
Jenže každý, kdo dělá poctivý výzkum, ví jednu věc: vzorek n = 1 nedokazuje vůbec nic. Mohl jsem mít prostě jen obrovské štěstí. A tak přišla chvíle poslat model na tvrdý zátěžový test.
6. Zátěžový test na 6 slavných osobnostech světa
Kde vzít legálně a okamžitě skutečné genomy lidí, jejichž povahu a životní styl zná celý svět? Přímo ve veřejném archivu UCSC Genome Browser (Personal Genomes, hg19), kde jsou s otevřeným souhlasem publikovány průkopnické lidské genomy z časopisů Nature, PLOS Biology, The Lancet a harvardského Personal Genome Project.
Vybral jsem 6 povahově maximálně kontrastních osobností. Aby to byl skutečný test bez zpětného přiohýbání, dodržel jsem přísnou předregistraci:
- Nejdřív jsem na základě známých životopisů zafixoval biografické Big Five (0–10) všech 6 lidí i jediný pevný matematický vzorec
10 os → Big Five. - Teprve potom skript stáhl všech 18 markerů z UCSC API, včetně kontroly kvality, která mimochodem u George Churche zachytila výpadek čtení v GC-bohatém exonu
ADORA2A rs5751876a opravila ho dvěma nezávislými přímo volanými markery (rs1008931 A/Aars2298383 T/T).
Protože populační četnosti i vazby (gnomAD v4 NFE) byly kalibrované na Evropany, rozdělil jsem test poctivě na hlavní evropskou kohortu (N = 5 včetně mě) a samostatnou kontrolní skupinu 2 osobností s africkým původem.
A · Hlavní evropská kohorta (5 evropských genomů · plný profil DNA-10)
| Osobnost · Kód (EUR vzácnost) | Co automaticky vygeneroval počítač (3 bloky) | Co sedělo vs. kde model narazil |
|---|---|---|
1. Jan TylPSV-EKSH-PS (1 : 24 500) | Pružný vizionář · mimořádně klidný, hluboce prožívající empatický mediátor · citlivý senzor (rychlá játra) + pohybový spínač | Sedí výborně (Big Five MAE 0,66 · 5/5): přesná shoda směru napříč všemi osami i praktickými pákami. |
2. Stephen Quake (Stanford, přes 180 patentů, šéf vědy CZI)PNB-EKSP-RB (1 : 2 500) | Pružný inovátor s tahem na novost · mimořádně klidný, pragmatický empatický mediátor · vyvážený motor + stabilní rutina | Vítěz shody ze slavných (MAE 1,84): mrazivá trefa na klid (N = 2,4 vs. 2,5, má stejnou dvojitou brzdu FAAH + HTR1A jako já!), pragmatismus i inženýrskou stabilitu (BDNF Val/Val). DNA ale podstřelila jeho extrémní disciplínu a vynálezeckou Otevřenost (5,6 vs. 9,0). |
3. George Church (Harvard, CRISPR, PGP-1 · 60× CG)MSS-BKBP-PM (1 : 4 500) | Hluboký systematik (COMT Met/Met) · vyrovnaně klidný, pragmatický, nezávisle laděný typ · vysokoobrátkový motor + pohybový spínač | Skvělý zásah v povaze i stylu: tichý, klidný, encyklopedický badatel (C = 7,3 vs. 7,5; E = 5,3 vs. 4,5). Největší poučný omyl testu: přes „systematické“ NRG1 C/C a CACNA1C G/G mu DNA předpověděla Otevřenost jen 4,2, přestože je jedním z nejradikálnějších vizionářů planety (9,8)! |
4. James Watson (Nobelova cena za DNA)PNS-BOSP-PS (1 : 12 400) | Pružný analytik s tahem na novost · vyrovnaně klidný, pragmatický, nezávisle laděný typ · citlivý senzor + pohybový spínač | 3 z 5 rysů do ±1,5 (E = 5,4 vs. 5,5). Plný kód ho oproti 5 krabicím krásně oddělil od Churche (vyskočil jeho dravý Taq1A A/G a citlivý senzor). Nedokázal ale odhadnout míru jeho proslulé netaktnosti (A = 5,8 vs. 2,0). |
5. J. Craig Venter (Celera Genomics, syntetická buňka)MSB-EKAH-PM (1 : 6 350) | Hluboký tvořivý myslitel · středně klidný (s vnitřním napětím HTR1A), hluboce prožívající empatický mediátor · vysokoobrátkový motor + pohybový spínač | Jasný a cenný rozpor: skvěle sedl vysokoobrátkový motor (ADORA2A C/C + CYP1A2 A/A + vzácná ranní alela RGS16 C/T) a vnitřní napětí, ale OXTR G/G („empatický mediátor“) tvrdě narazil na jeho pověstnou konfliktnost a rivalitu (A = 7,3 vs. 3,0). |
B · Kontrolní škatulka mimo evropskou kalibraci (2 osobnosti s africkým původem)
Zde se nádherně ukázalo, jak nebezpečné je přenášet evropské škatulky na jiné populace, a zároveň jak moc pomohlo zrušení 5 krabic:
- Arcibiskup Desmond Tutu (Nobelova cena míru, JAR ·
VRB-EOBH-RB): Když jsem ho nacpal do 5 krabic, vyšel jako absurdní „Průzkumník hranic“, protože variantaDRD2 Taq1A A1/A1, která je v Evropě vzácná (~4 %), je v afrických populacích mnohem běžnější. Plný profil DNA-10 chybu z velké části opravil: vedle odvahy pod tlakem (COMT Val/Val) vrátil do popředí jeho hluboce prožívajícího empatického mediátora (OXTR G/G+CACNA1C G/A) a perfektně trefil Extraverzi (8,4 vs. 8,5). - Henry Louis Gates Jr. (harvardský historik a moderátor pořadu Finding Your Roots ·
VSS-BZAI-RM): V 5 krabicích vypadal jako chladný „Krizový stratég“. Plný kód ale odhalil mimořádnou kombinaci: vzácný top klid pod tlakem (FAAH A/A, jen ~4 % v Evropě) +COMT Val/Val+ odolný motor (ADORA2A C/C) spojené s extrémní emoční intenzitou (CACNA1C A/A), tedy přesný portrét suverénního, hluboce vnímavého vypravěče před televizní kamerou.
7. Neúprosný přehazovací test 5×5: Obrana proti Barnumovu efektu
Když si člověk čte bohaté 3složkové popisy z tabulky výše, má chuť zajásat: „Vždyť 4 z 5 Evropanů sedí zhruba na 8 až 9,5 bodu z 10!“ Jenže přesně tady číhá stará psychologická past známá jako Barnumův efekt: čím bohatší a plastičtější popis počítač vygeneruje, tím snáz si v něm najdeme trefy, i kdyby patřil někomu jinému.
Abych sám sobě nic nenalhával, spustil jsem úplně neúprosný matematický přehazovací test 5×5 na našich 5 Evropanech. Spočítal jsem chybu (MAE) mezi DNA každého z nich a realitou všech pěti (hvězdička * označuje vlastní DNA):
| DNA ↓ / Realita → | Jan | Quake | Church | Watson | Venter |
|---|---|---|---|---|---|
| DNA Jan | 0,66* | 1,20 | 1,40 | 2,08 | 2,18 |
| DNA Quake | 1,10 | 1,84* | 2,00 | 3,04 | 2,62 |
| DNA Church | 1,86 | 1,84 | 2,12* | 2,04 | 2,34 |
| DNA Watson | 1,98 | 2,20 | 2,52 | 2,16* | 2,46 |
| DNA Venter | 1,18 | 1,72 | 2,16 | 1,92 | 2,18* |
A tady je čistý matematický výsledek ze všech 5! = 120 možných přeházení (bez jediného subjektivního slova):
- Průměrná chyba na vlastní DNA:
MAE = 1,79vs. chyba na cizí DNA:MAE = 1,99(náskok+0,20bodu pro vlastní DNA). - Pořadí skutečného spárování ze 120 kombinací: 16.–17. nejlepší ze 120 = horních 13–14 %! (Čistá náhoda je 50 %.)
- I když přidáme oba ne-evropské genomy (
7×7= 5 040 přeházení): vlastní DNA stále drží náskok (1,90vs.2,05), skutečné přiřazení je 784. z 5 040 (horních 15,6 %) a celková korelace napříč 35 skóre jer = +0,46(u 6 slavných úplně beze mě: horních 24,6 % ze 720 přeházení,r = +0,38). - Které dimenze Big Five šly z 10 genů předpovědět nejlépe (na 6 slavných)?
- Extraverze (
E):MAE = 0,95,r = +0,68(Tutu 8,4 vs. 8,5 · Watson 5,4 vs. 5,5 · Church 5,3 vs. 4,5) - Neuroticismus (
N):MAE = 1,43,r = +0,24(Quake 2,4 vs. 2,5) - Svědomitost (
C):MAE = 1,88(hlavně věc životních návyků) - Přívětivost (
A):MAE = 2,90(u Ventera a Watsona jasně zvítězilo ego a prostředí) - Otevřenost (
O):MAE = 3,38(výběrové zkreslení „klubu géniů“: všichni slavní měli O = 8–9,8, ale 10 běžných SNP génia samo nepozná)
- Extraverze (
Matice 5×5 ukázala pravdu z obou stran. Ano, můj DNA profil seděl na Quakea i Churche překvapivě blízko, což krásně odhaluje sílu Barnumova efektu u volného čtení. Zároveň ale vlastní DNA celkově porazila cizí DNA a skončila v horních 14 % ze všech kombinací, což potvrzuje reálný biologický signál vysoko nad náhodou.
8. Kam náš DNA-10 patří vedle HEXACO, Big Five, MBTI a horoskopů?
Když na konci experimentu srovnáme náš přístup s nejznámějšími osobnostními systémy, a hodnotíme je přísně podle reálného chování a pracovního výkonu (nikoli podle toho, jak dobře opisují naše „ideální já“), dostaneme pozoruhodně čistou mapu:
| Systém / nástroj | Co reálně měří | Reálné chování / výkon (r) | Stabilita v čase | Biologický základ |
|---|---|---|---|---|
| ★ HEXACO + DNA-10 (vítězná kombinace) | Dnešní dospělou povahu i biologický „hardware“ pod ní | Špička (r ≈ 0,35 + biopáky) | 83–100 % | Nejvyšší |
| HEXACO („Big Five 2.0“ · 6 os) | 6 spojitých dimenzí (přidává Poctivost–Skromnost) | Nejlepší v psychologii (r ≈ 0,30–0,45) | ~83 % | Střední–vyšší |
| Plný Big Five (NEO-PI-R / IPIP) | 5 spojitých faktorů OCEAN | Velmi silný (r ≈ 0,25–0,45) | ~80 % | Střední–vyšší |
| Cloningerův TCI | 4 osy biologického temperamentu + 3 charakteru | Silný (r ≈ 0,20–0,35) | ~75 % | Vysoký |
| ★ Náš DNA-10 (JEDNA test · 10 os) | 10 funkčních mozkových okruhů & „továrních pák“ | Chování: top 14 % (5×5) Biopáky: ~55–75 % | 100 % (DNA nelže) | Nejvyšší |
| Celogenomové DNA PGS (miliony SNP) | Celou běžnou genetickou složku Big Five | Populačně reálný, u jednotlivce šum (r ≈ 0,10–0,22) | 100 % | Vysoký |
| DISC (4 barvy) | 2 zjednodušené pracovní osy | Nízká (r ≈ 0,10–0,20) | ~65 % | Nízký |
| MBTI (16 typů) | 4 binární škatulky (silný efekt „ideálního já“) | Velmi nízká (r ≈ 0,05–0,15) | Slabá (~52 %) | Žádný |
| Enneagram (9 typů) | 9 mysticko-koučovacích motivací | Velmi nízká (r ≈ 0,05–0,15) | ~48 % | Žádný |
| Grafologie (rukopis) | Tvar a sklon ručního písma | Téměř 0 (r ≈ 0,00–0,05) | ~45 % | Žádný |
| Human Design & Horoskopy | Datum, čas a místo narození | 0,00 (čistá náhoda) | 100 %* (stálé datum!) | Žádný |
Tři postřehy, které z téhle tabulky trčí nejvíc:
- Stabilita sama o sobě neznamená pravdivost. Horoskop má 100% stabilitu (datum narození se nikdy nezmění), ale nulovou predikční hodnotu.
- MBTI klame efektem „ideálního já“. V sebepopisu se 4 škály MBTI částečně kryjí s Big Five (McCrae & Costa, 1989), ale úplně ignorují Neuroticismus, polovina lidí přepíná typ po pár týdnech a lidé v nich klikají, jakými by chtěli být (každý chce být vzácný stratég
INTJ). V predikci reálného pracovního chování proto padá hluboko dolů. - DNA nejde obelhat. Náš DNA-10 nikdy nenahradí HEXACO nebo Big Five v měření toho, co z vás udělalo 40 let života, ambicí a zkušeností. Má ale přesně to, co žádnému dotazníku chybí: nulové přikrášlování a přímý návod k obsluze mozku (kofeinový paradox
CYP1A2/ADORA2A, pohybový spínačBDNF, stresová biochemieCOMT/FAAH/HTR1A).
A přesně proto je nejsilnějším výstupem celého experimentu kombinace HEXACO + DNA-10: psychologický test přesně změří, kým dnes jste, a 10 biologických os ukáže tovární hardware pod kapotou. Rozdíl mezi těmi dvěma pak odhalí to vůbec nejzajímavější: kde jedete s větrem v zádech a co jste si v životě vytrénovali proti vlastní biologii.
9. Co si z toho odnáším (a co bude dál)
Tenhle experiment měl být původně jen zvědavým testem, kam až se dnes jeden člověk s frontier AI modely a otevřenými vědeckými databázemi dostane nad vlastním genomem. Ukázal mi dvě věci zároveň:
- AI už dnes zvládne skutečnou multi-omickou syntézu na úrovni výzkumné laboratoře. Platí to ale jen tehdy, když jí nevěříte naslepo, hlídáte orientaci vláken, prověřujete chybějící pokrytí a ověřujete každý výstup proti primárním databázím.
- Vědecká pokora je důležitější než hezký výsledek z
n = 1. Kdybych experiment skončil u sebe (MAE 0,66,5/5), mohl bych vykládat, že jsem vynalezl neomylný genetický test povahy. Až zátěžový test na šesti slavných osobnostech (hlavně George Church, J. Craig Venter a Desmond Tutu) nastavil realitu přesně tam, kam patří: ne věštírna osudu, ale překvapivě užitečná, biologicky ukotvená mapa osobních pák.
Poznámka k metodice a odpovědnosti: Všechny uvedené genetické analýzy (včetně výstupů Google DeepMind AlphaGenome) jsou výhradně výzkumného a vzdělávacího charakteru, nikoli lékařskou ani psychologickou diagnostikou. Pilotní skupina N = 5 Evropanů (respektive N = 7 celkem) slouží jako konceptuální ověření; pro přesnou kalibraci na běžné populaci by byl potřeba slepý test na stovkách dobrovolníků s vyplněným plným dotazníkem HEXACO / NEO-PI-R.
Odkazy a primární zdroje (k vlastnímu ověření)
Veřejné genomické databáze a AI nástroje
- Google DeepMind AlphaGenome (Nature, 2025/2026): nature.com/articles/s41586-025-10014-0 · GitHub: github.com/google-deepmind/alphagenome
- gnomAD v4 (evropské populační četnosti NFE a evoluční constraint): gnomad.broadinstitute.org
- GTEx Portal v10 (tkáňová exprese a mozkové eQTL): gtexportal.org
- Open Targets Platform (
L2Gfine-mapping): platform.opentargets.org - NHGRI–EBI GWAS Catalog: ebi.ac.uk/gwas
- ENCODE SCREEN (cCREs & regulační prvky): screen.encodeproject.org
- UCSC Genome Browser (Personal Genomes
hg19): genome.ucsc.edu
Klíčové vědecké studie k jednotlivým 10 osám
COMT(rs4680) a stres v prefrontální kůře: Chen J. et al. (2004). Functional analysis of genetic variation in catechol-O-methyltransferase (COMT). Am J Hum Genet (PubMed 15457404) · Arnsten A. F. T. (2009). Stress signalling pathways that impair prefrontal cortex structure and function. Nature Reviews Neuroscience (PubMed 19455173)CADM2(rs17518584): Ibrahim-Verbaas C. A. et al. (2016). GWAS for executive function and processing speed suggests involvement of the CADM2 gene. Mol Psychiatry (PubMed 25869804)NRG1(rs6994992): Kéri S. (2009). Genes for psychosis and creativity: a promoter polymorphism of the neuregulin 1 gene is related to creativity in people with high intellectual achievement. Psychol Sci (PubMed 19594860)OXTR(rs53576): Rodrigues S. M. et al. (2009). Oxytocin receptor genetic variation relates to empathy and stress reactivity in humans. PNAS (PubMed 19934046)FAAH(rs324420): Dincheva I. et al. (2015). FAAH genetic variation enhances fronto-amygdala function in mouse and human. Nature Communications (PubMed 25731744)HTR1A(rs6295): Lemonde S. et al. (2003). Impaired repression at a 5-hydroxytryptamine 1A receptor gene polymorphism associated with major depression and suicide. J Neurosci (PubMed 14507979)CACNA1C(rs1006737): Ferreira M. A. et al. (2008). Collaborative genome-wide association analysis supports a role for ANK3 and CACNA1C. Nature Genetics (PubMed 18711365)BDNF(rs6265): Egan M. F. et al. (2003). The BDNF val66met polymorphism affects activity-dependent secretion of BDNF and human memory and hippocampal function. Cell, 112(2), 257–269.- Chronotyp (
RGS16/CLOCK): Jones S. E. et al. (2019). Genome-wide association analyses of chronotype in 697,828 individuals. Nature Communications (PubMed 30696823) · Katzenberg D. et al. (1998), Sleep (PubMed 9779516) ADORA2A(rs5751876): Childs E. et al. (2008). Association between ADORA2A and DRD2 polymorphisms and caffeine-induced anxiety. Neuropsychopharmacology (PubMed 18305461)
Behaviorální genetika, psychometrie a srovnání testů osobnosti
- Kritika jednoduchých kandidátních genů: Border R. et al. (2019). No Support for Historical Candidate Gene or Candidate Gene-by-Interaction Hypotheses for Major Depression Across Multiple Large Samples. Am J Psychiatry (PubMed 30845820)
- GWAS osobnosti (Big Five & Neuroticismus): Lo M.-T. et al. (2017), Nature Genetics (PubMed 27918536) · Nagel M. et al. (2018), Nature Genetics (PubMed 29942085)
- MBTI vs. Big Five: McCrae R. R. & Costa P. T. (1989). Reinterpreting the Myers-Briggs Type Indicator from the perspective of the five-factor model of personality. J Pers (PubMed 2709300)
- Model HEXACO: Ashton M. C. & Lee K. (2007). Empirical, theoretical, and practical advantages of the HEXACO model of personality structure. Personality and Social Psychology Review, 11(2), 150–166 · hexaco.org
Publikované veřejné genomy testovaných osobností
- J. Craig Venter: Levy S. et al. (2007). The diploid genome sequence of an individual human. PLOS Biology (PubMed 17803354)
- James Watson: Wheeler D. A. et al. (2008). The complete genome of an individual by massively parallel DNA sequencing. Nature (PubMed 18421352)
- Arcibiskup Desmond Tutu: Schuster S. C. et al. (2010). Complete Khoisan and Bantu genomes from southern Africa. Nature (PubMed 20164927)
- Stephen Quake: Ashley E. A. et al. (2010). Clinical assessment incorporating a personal genome. The Lancet (PubMed 20417939)
- George Church (PGP-1) & Henry Louis Gates Jr.: Harvard Personal Genome Project (personalgenomes.org)